2026年9月13日

(院長の徒然コラム)
はじめに
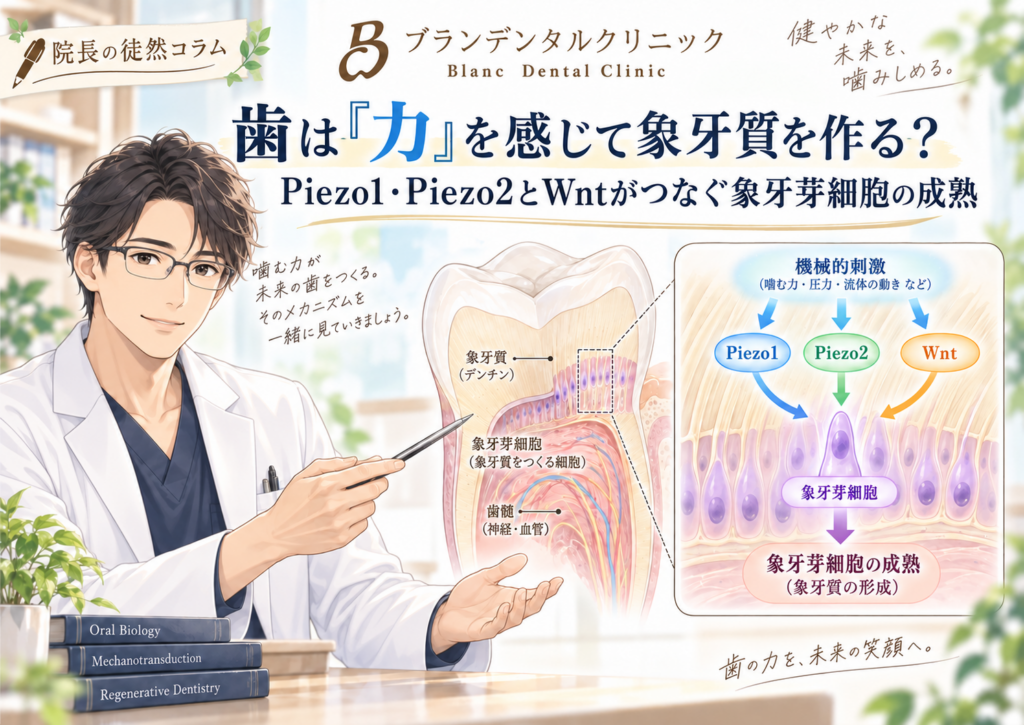
歯科医師にとって象牙芽細胞(odontoblast)は、まず「象牙質を作る細胞」です。
歯髄の最外層に整列し、細長い象牙芽細胞突起を象牙細管内へ伸ばしながら象牙前質を分泌し、やがて石灰化した象牙質を形成する。歯の発生学や組織学で繰り返し学んできた細胞です。
ところが近年、この象牙芽細胞像はかなり複雑になってきました。
象牙芽細胞は硬組織を一方向に作り続けるだけではありません。温度、化学刺激、象牙細管内液の移動に伴う膜変形などを感知し、細胞内Ca2+濃度を変化させ、ATPを放出し、近接する神経と情報をやり取りする「感覚受容細胞」としての性格も持つことが示されてきました。
そのメカノトランスダクション(mechanotransduction)、すなわち機械刺激を電気的・生化学的シグナルへ変換する過程で注目されているのが、機械感受性陽イオンチャネルのPiezo1とPiezo2です。
2022年には、ヒト歯髄幹細胞から誘導した象牙芽細胞様細胞(odontoblast-like cell)へ流体せん断応力や直接機械刺激を加えると、PIEZO1を介する急速なCa2+流入と内向き電流が起こり、ATP放出が増加することが示されました。放出されたATPは三叉神経節ニューロンを興奮させます。
動物実験でも、露出象牙質へ冷水刺激を加えたときの疼痛行動が、Piezo、PANX1、P2X3系を阻害すると低下することが報告されています。
つまりPiezoは、「歯が力を感じる」という話ではすでに登場していました。
ところが2026年9月10日、International Journal of Oral Scienceに掲載されたNieらの研究は、その話をさらに発生段階までさかのぼらせました。
Piezo1とPiezo2は、成熟した象牙芽細胞が力を感じるためだけではなく、そもそも前象牙芽細胞が「象牙質を作る成熟細胞」になる過程そのものにも関わっているのではないか。
今回の論文が問うたのは、そこです。
2026年9月10日の原著は何を調べたのか
今回取り上げる原著は、Nie X, Huang K, Chu E, Chung MKによる、Piezo channels contribute to the terminal cytodifferentiation of odontoblasts via modulation of canonical Wnt signaling.です。
International Journal of Oral Science 2026年、第18巻、Article 61として公開されました。
タイトルにあるterminal cytodifferentiation、すなわち「終末分化」がこの研究を理解する鍵です。
歯の発生過程では、神経堤由来の歯原性間葉から前象牙芽細胞(pre-odontoblast)が生じ、それが高円柱状で極性を持つ成熟象牙芽細胞へ変化します。成熟した象牙芽細胞は象牙前質を分泌し、象牙質形成を開始します。
今回問題となっているのは、その最後の仕上げにあたる終末分化です。
著者らは単にPiezo1/Piezo2の発現を見るだけではなく、Piezo1単独conditional knockout、Piezo2単独conditional knockout、Piezo1/Piezo2二重conditional knockout、歯胚のex vivo器官培養、Wnt10aによるrescue experiment、Piezo1作動薬Yoda1による薬理学的介入を組み合わせました。
ただし、ここで用いられたconditional knockoutは「象牙芽細胞だけ」からPiezoを消したモデルではありません。
著者らはWnt1-Cre2を用いて、象牙芽細胞を含む神経堤由来系譜でPiezo1/Piezo2を欠損させています。この点は後で研究の限界を考えるうえでも重要になります。
細胞が「力を感じる」とはどういうことなのか
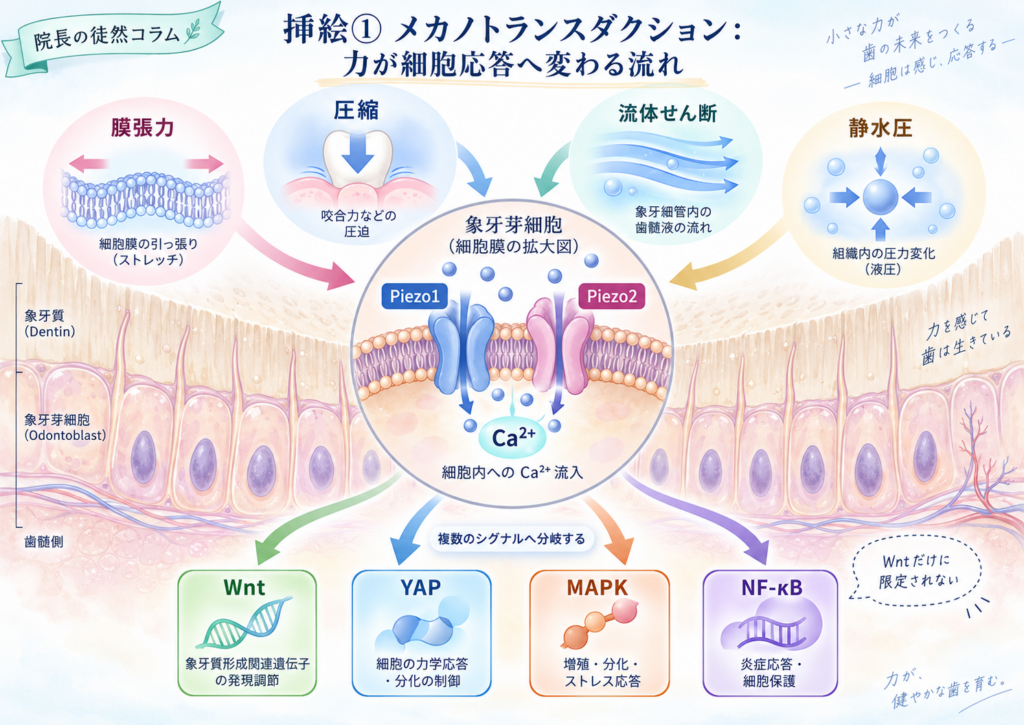
メカノトランスダクションとは、細胞に加わった機械刺激を、電気的あるいは生化学的な細胞内シグナルへ変換する過程です。
細胞は、細胞膜の張力、伸展、圧縮、流体せん断応力、静水圧、細胞外基質の硬さ、細胞骨格から加わる張力など、さまざまな物理情報にさらされています。
Piezo1/Piezo2は、そのような物理情報を読み取るmechanosensitive ion channelです。Piezo1が開口するとCa2+などの陽イオンが細胞内へ流入し、そのCa2+シグナルを起点として、細胞種や状況に応じてWnt、YAP、MAPK、NF-κBなど多様な経路が変化します。
2024年のdentin mechanobiologyの総説でも、象牙質は単なる硬い支持組織ではなく、その粘弾性、象牙細管、象牙芽細胞突起、歯髄神経との配置まで含めて、機械的支持、感覚、修復を結び付ける組織として整理されています。
歯科臨床では「咬合」「知覚過敏」「第三象牙質」「歯髄再生」を別々に考えることが多いのですが、細胞生物学的には、その一部が「物理情報を細胞がどう読むか」という共通問題につながり始めています。
Piezo1とPiezo2は、象牙芽細胞が成熟する時期に増えていた
著者らはまず、歯の発生過程でPiezo1/Piezo2がいつ、どこに現れるのかを調べました。
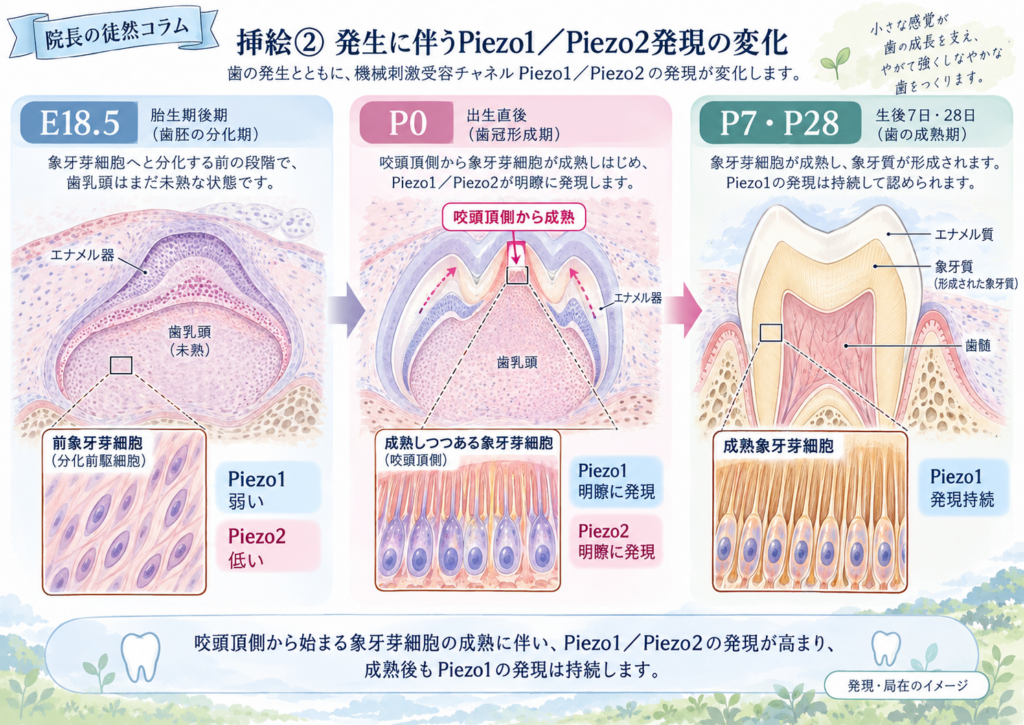
胎生18.5日、E18.5のlate bell stageでは、Piezo1は前象牙芽細胞や歯髄細胞で弱く発現していました。
ところが出生時P0になると、Piezo1の発現は象牙芽細胞層で明瞭になります。しかも最初に強くなるのは、象牙芽細胞の分化が最も先行している咬頭頂側です。
Piezo2も前象牙芽細胞と象牙芽細胞に認められましたが、発現はPiezo1より低いレベルでした。Piezo1はさらにP7、P28でも象牙芽細胞に残ります。
象牙芽細胞の終末分化が進む時期・場所と、Piezo1/Piezo2発現が強くなる時期・場所が重なっている。これは興味深い所見です。
ただし、発現が重なっただけでは因果関係は分かりません。
成熟したからPiezoが増えたのか。Piezoが増えたから成熟したのか。あるいは両者を共通して制御する第三の仕組みがあるのか。
そこで著者らは遺伝子欠損モデルへ進みます。
Piezo1だけを消しても、Piezo2だけを消しても大きな歯の異常は出なかった
Wnt1-Cre2を用いて神経堤由来系譜からPiezo1を単独で欠損させても、大多数のマウスで歯の発生はほぼ正常でした。
Piezo2単独cKOでも、出生時まで明瞭な歯の形成異常は認められませんでした。Piezo2 cKOマウス自体は呼吸障害のため出生時に死亡しますが、その時点までの歯には大きな異常が観察されていません。
そこで著者らが考えたのが、機能的冗長性(functional redundancy)です。
Piezo1がなくてもPiezo2が一部を補う。Piezo2がなくてもPiezo1が補う。
そこでPiezo1とPiezo2を同時に欠損させた二重欠損、以下dKOを調べました。そこで初めて明瞭な表現型が現れます。

Piezo1とPiezo2を両方失うと、象牙芽細胞の成熟が遅れた
E18.5以前では、Piezo1/Piezo2 dKOと対照群との間に明らかな歯胚構造の差は認められませんでした。
細胞増殖を評価するPHH3、細胞死を評価するTUNELでも大きな差はありません。したがって、単純に「細胞が増えなくなった」「細胞死が増えた」ために歯形成が遅れたという結果ではありません。
しかしP0になると差が現れます。
- 象牙芽細胞層高の低下
- エナメル芽細胞層高の低下
- DSPP発現低下
- ALPL発現低下
- COL1A1発現低下
が観察されました。
ただし、ここで一つ注意が必要です。
Wnt1-Cre2はoral epithelial layer、すなわちエナメル上皮を標的としていません。そのため、dKOで観察されたエナメル芽細胞層の異常は、エナメル芽細胞そのものからPiezo1/Piezo2を欠損させた結果ではありません。
原著では、象牙芽細胞側の発生異常に伴う二次的影響である可能性が考察されています。
「Piezoがなければ象牙芽細胞ができない」わけではない
P0の結果だけを見ると、「Piezo1とPiezo2がなければ象牙芽細胞は形成できない」と書きたくなります。
しかし、これは強すぎる解釈です。
より発生が進んだP0のdKOでは、咬頭部に明瞭な基質沈着が現れました。さらに象牙芽細胞層高も対照群に近づいています。
つまり、象牙芽細胞分化も象牙質形成も完全停止したわけではありません。
Piezo1/Piezo2欠損によって、象牙芽細胞の終末分化を適切なタイミングで十分に押し進める能力が低下したと読む方が適切です。
Piezo1/Piezo2は象牙芽細胞分化の単純なON/OFFスイッチというより、終末分化の速度や完成度を調節する系として捉えた方が、原著の結果に合います。
そこでWnt10a/β-cateninが出てきた
著者らが次に注目したのがcanonical Wnt signalingです。
Wnt signalingは歯の発生過程で、細胞運命、増殖、極性、分化、形態形成などを制御する重要なシグナル経路です。
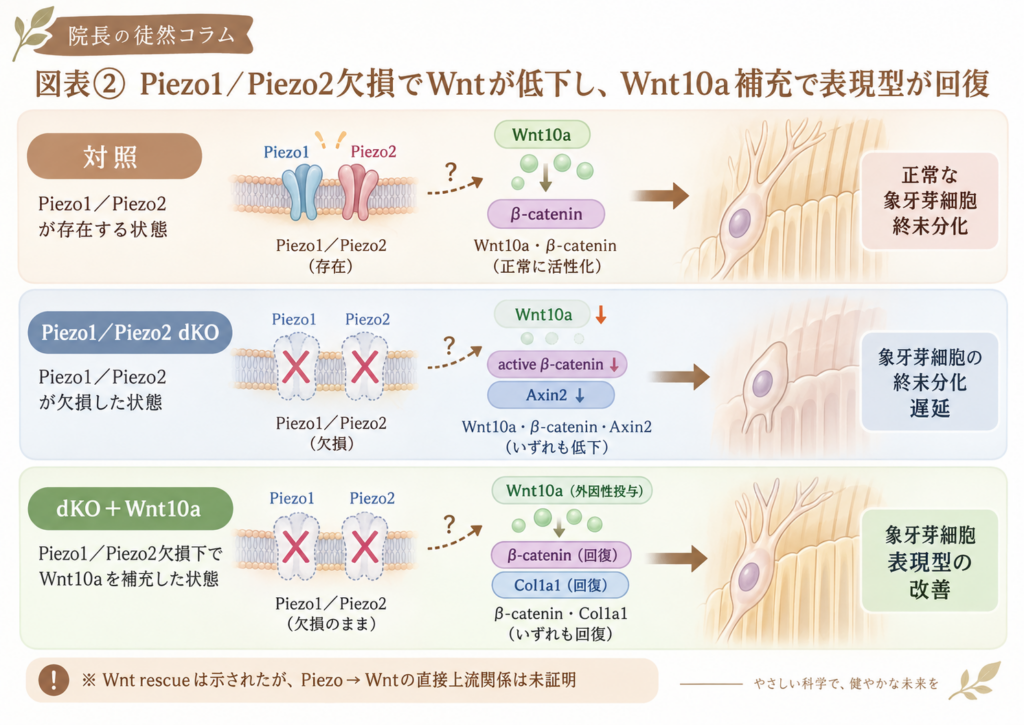
今回のdKOでは、象牙芽細胞終末分化が進むE19.5からP0にかけて、Wnt10a、active β-catenin、Axin2がいずれも低下しました。
Wnt10aは今回突然登場した分子ではありません。Yamashiroらは2007年、Wnt10aがDSPP発現や象牙芽細胞分化、歯の形態形成を結び付ける可能性を報告しています。
したがって今回の結果は、Piezo1/Piezo2欠損、象牙芽細胞終末分化遅延、canonical Wnt signaling低下という三つの現象が同時に起きていることを示します。
ただし、この段階ではまだ因果関係の一方向性は証明されていません。
そこで行われたのがrescue experimentです。
Wnt10aを補うと、Piezo1/Piezo2欠損歯胚の表現型が救済された
著者らはE14.5の歯胚をex vivoで培養し、Piezo1/Piezo2 dKO歯胚へWnt10aを加えました。
すると、低下していた象牙芽細胞層高、エナメル芽細胞層高、β-catenin-pY489、Col1a1が対照群に近い方向へ回復しました。
ここは今回の研究のかなり強い部分です。
「Piezo欠損でWntが下がっていた」という観察だけではなく、下がったWnt signalingを外から補うと、Piezo欠損下でも象牙芽細胞の表現型が改善した。
これによって、PiezoとWntの間に少なくとも機能的な関連が存在することは強く支持されます。
それでも「Piezo1/2→Wnt10a→β-catenin」という一本道ではない
ここは非常に大切です。
原著の著者ら自身が、Piezo channelsがWnt signalingのdirect upstream regulatorであることは、この研究では証明していないと書いています。
Piezoが別の中間分子を介してWntに影響しているかもしれません。Piezo系とWnt系が並列に存在し、途中でクロストークしている可能性もあります。
したがって現時点では、Piezo1/Piezo2とWnt10a/β-cateninの関係を、確定した一本道として扱うべきではありません。
今回示されたのは、Piezoとcanonical Wnt signalingの機能的連関です。
Yoda1を使うと、今度は分化促進方向へ動いた
著者らはさらに、Piezo1を薬理学的に活性化しました。使用したのはPiezo1作動薬として広く研究に用いられているYoda1です。
ここは実験条件を正確に読む必要があります。
Yoda1は新生仔マウスへ直接投与されていません。
E18.5とE19.5の妊娠C57BL/6マウスへ、1 mg/kgを1日2回腹腔内投与し、その後出生した仔をP0で解析しています。
Yoda1群では象牙芽細胞の極性化・配列がより同期して見られ、Col1a1、Wnt10a、β-catenin-pY489が増加しました。
一方で、Fig.7で定量された象牙芽細胞層高そのものには有意差がありません。
したがって、「Yoda1で象牙芽細胞層が厚くなった」とは言えません。
より正確には、Yoda1投与によって象牙芽細胞の形態的成熟、基質関連マーカー、Wnt signalingが促進方向へ変化したと表現するべきでしょう。
またYoda1投与はvehicle群3母体、Yoda1群3母体で行われ、仔の解析はn=5または6です。母体から複数の仔が得られる実験であるため、仔を解析単位とした際のlitter effectを統計学的にどのように扱ったかは本文から明確ではありません。
これは結果を否定するものではありませんが、薬理学的実験の解釈では留保しておきたい点です。
さらに著者ら自身、Yoda1のoff-target effectを完全には除外できないとしています。
では、歯胚のPiezoは「何の力」を感じていたのか
ここまで読むと一つの疑問が生じます。
Piezoはmechanosensitive ion channelです。では、胎生末期の歯胚でPiezo1/Piezo2へ入力されていた「力」は何なのでしょうか。
実は今回の論文は、それを直接測定していません。
咬合力を加えたわけでもありません。歯を噛ませたわけでもありません。流体せん断応力を定量的に負荷したわけでもありません。歯胚内のPiezo currentを直接測定したわけでもありません。
しかも主な表現型が現れるのは胎生末期から出生直後で、本格的な咀嚼が始まる前です。
発生中の歯胚でPiezoへの入力となり得る候補としては、細胞増殖、組織形態変化、細胞移動、細胞骨格張力、細胞外基質の物性、局所組織圧などが考えられます。
ただし今回の研究は、そのどれをPiezo1/Piezo2が実際に感知したのかを特定していません。
では「よく噛めば象牙質が増える」のか
タイトルの問いに一度戻ります。
歯は「力」を感じて象牙質を作る。では、よく噛めば象牙質が増えるのでしょうか。
今回の論文からは、そこまでは言えません。
以前、院長の徒然コラムで咬合性外傷とアブフラクション仮説を混同しないための「力」の考え方を扱いました。
Piezo1は歯周膜や歯槽骨のmechanotransductionでも研究されていますが、「力が生物学的に重要」であることと、「力を加えれば目的の硬組織が増える」ことは別問題です。
NottmeierらはDmp1発現細胞、すなわち成熟骨芽細胞・骨細胞・セメント質系細胞・象牙芽細胞などでPiezo1を条件付き欠損させたマウスを用いて矯正歯牙移動を調べました。
Piezo1欠損によって顎顔面骨量低下や破骨細胞増加は認められた一方、矯正歯牙移動量そのものには差がありませんでした。
一方、Duらが2025年にhuman periodontal ligament stem cellへ0.1 Hz、12% elongationのcyclic tensionを加えた研究では、Piezo1発現、Ca2+流入、CaMKII、YAP、β-catenin、Runx2、ALPなどが増加しました。
ただし、この研究ではPiezo1を薬理学的あるいは遺伝学的に直接操作していません。著者ら自身もその点をlimitationとして挙げており、張力によって生じた一連の変化をPiezo1が因果的に媒介したことまで証明した研究ではありません。
同じ「歯に加わる力」でも、どの細胞に、どの方向から、どの強さで、どの時間加わったのかで生物学的出力は変わります。
「Piezo=力=硬組織形成」と一直線にしてはいけません。
Piezoは以前から象牙質痛の研究でも重要だった
今回の発生研究を理解するうえで、象牙質知覚の研究は無関係ではありません。
象牙質表面へ冷風や擦過刺激が加わると、象牙細管内液が動きます。そのhydrodynamic forceによる膜変形を象牙芽細胞が感知し、Ca2+シグナルやATP放出へ変えるというモデルが研究されてきました。
象牙細管内液の移動と知覚過敏の基本的な考え方については、以前の象牙質知覚過敏と象牙細管閉鎖を扱った記事でも触れています。
Sunらの2022年研究では、象牙芽細胞様細胞への流体せん断応力や直接機械刺激によってPIEZO1依存性のCa2+流入と内向き電流が起こり、ATPが放出されました。さらに、そのATPは三叉神経節ニューロンの活動電位頻度を増加させました。
象牙芽細胞は「象牙質を作る細胞」であると同時に、「外部の物理刺激を化学信号へ変換する細胞」でもある。
今回のNieらの研究は、その二つの顔をさらに近づけた研究とも読めます。
象牙芽細胞だけが感じているわけではない
ただし、象牙質知覚をすべて「象牙芽細胞のPiezo」で説明するのも危険です。
Choらは2022年、Piezo1が三叉神経節ニューロンと歯髄を支配する神経軸索にも存在することを報告しました。
- Aδ線維 60.2%
- Aβ線維 24.3%
- C線維 15.5%
という分布が、ラットのPiezo1陽性軸索で報告されています。
ヒト歯髄でもPiezo1陽性のNF200陽性軸索が末梢歯髄にネットワークを形成し、象牙質方向へ伸びていました。
Piezo2も単なるPiezo1の予備ではありません。
2025年には、dental primary afferent neuronにおけるPiezo2-mediated mechanotransductionの機能的役割が報告されています。Nieらの2026年論文も、この研究を歯科領域におけるPiezo2研究の重要な先行報告として引用しています。
したがって、「Piezo1が主役で、Piezo2はPiezo1がないときだけ補う」とまで単純化するのも早計です。
歯髄‐象牙質複合体では、象牙芽細胞、歯髄神経、Piezo1、Piezo2、TRP channel群、PANX1、purinergic receptorなどが重なり合って働いている可能性があります。
象牙芽細胞は「作る能力」を先に獲得し、「感じる回路」は後から整うのか
東京歯科大学から興味深い発生学的研究があります。
生後0、3、6、9、12日齢のラット臼歯を追跡した研究では、未熟な象牙芽細胞ではDSP、TRPV4、TRPA1、PANX1はいずれもまだ明瞭に認められません。
象牙芽細胞の分化と象牙質石灰化が進むにつれて、これらの発現が現れます。そして神経線維を示すNF陽性反応は、さらに遅れて象牙芽細胞層へ進入します。
非常に単純化すれば、
象牙質を作る細胞へ成熟する
↓
刺激を感知・伝達する分子装置が整う
↓
神経との機能的配置が整う
という発生順序が考えられます。
今回のNieらが扱ったのは、そのさらに上流側の前象牙芽細胞から成熟象牙芽細胞への終末分化です。
つまりPiezo1/Piezo2は、完成した象牙芽細胞が「感じる」ときだけではなく、その細胞自身が完成する途中にも関与する可能性が出てきたわけです。
ただし、田中氏の研究は免疫組織学的な発現時期を調べた研究です。
チャネルや神経線維が存在することと、その時点で機能的な感覚受容が完成していることは同義ではありません。著者自身も、生理学的機能の成立については追加研究が必要としています。

ところが、Piezo1を刺激すれば象牙質形成が増えるわけではない
ここからが今回、最も重要なところだと思います。
2026年のNieらだけを読めば、Piezoを消すと象牙芽細胞終末分化が遅れ、Piezo1をYoda1で刺激するとWnt signalingや分化関連所見が促進方向へ動きます。
すると、Piezo1を刺激すれば象牙質形成を促進できるのではないかと考えたくなります。
しかし既存研究を並べると、話はかなり複雑です。
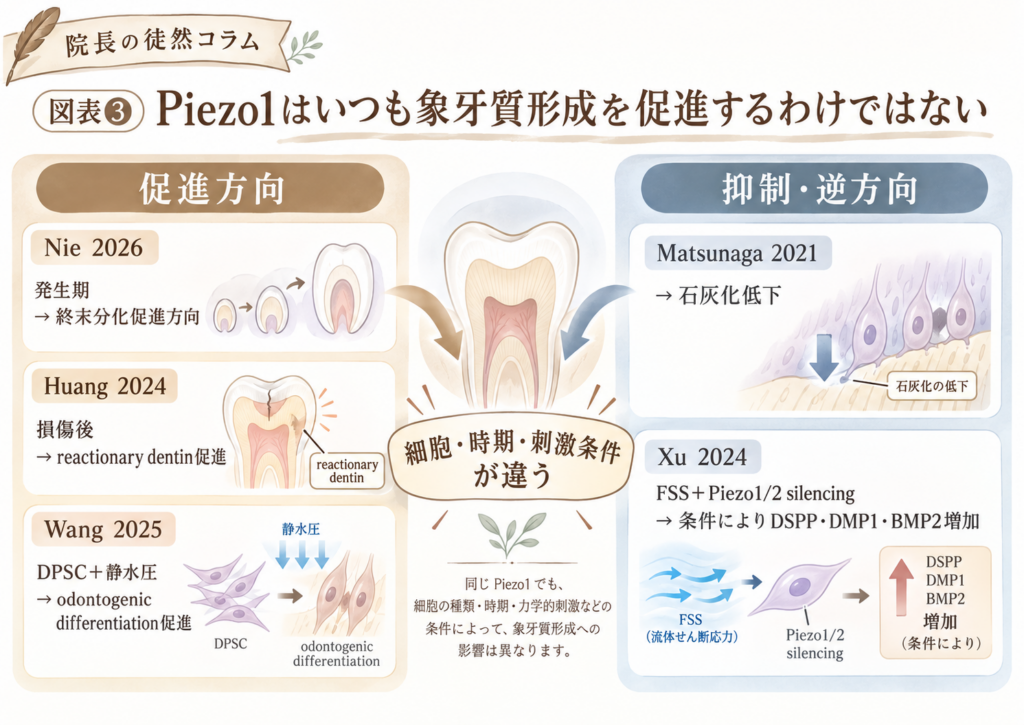
2024年の研究ではPiezo1が反応象牙質形成を促進した
Huangらは2024年、ヒト第三大臼歯、マウス臼歯、human odontoblast-like cellを用いてPIEZO1を研究しました。
培養系では、PIEZO1 → Ca2+ → PI3K-Akt → SEMA3A → DSPP・DMP1・COL1A1という経路が示されています。
さらにマウスでは、Dmp1-Creを用いてPiezo1を条件付き欠損させています。Dmp1-Creは象牙芽細胞だけに限定されたCreではありませんが、この損傷モデルでは既存象牙芽細胞による反応象牙質形成を評価しています。
通常時には目立った歯の形態異常がなかった一方、象牙質を損傷すると、Piezo1条件付き欠損群では反応象牙質形成量が低下し、DspとSema3aも低下しました。
平常時には他のmechanosensorなどで代償できても、損傷時にはPiezo1の役割が表面化する。そう解釈できる結果です。
一方、別の研究ではPiezo1活性化で石灰化が減った
ここで逆方向の研究があります。
Matsunagaらは2021年、ヒト象牙芽細胞モデルでPiezo1を介したmechanical stimulation-induced Ca2+ signalingを解析し、Piezo1活性化が象牙質石灰化を低下させることを報告しました。
さらに東京歯科大学の倉島氏らは、その後の研究でmechanosensory responseの下流を掘り下げ、Piezo1 → cPLA2 → COX1代謝産物 → TRPA1/TRPV1という経路を示しています。
つまり「Piezo1活性化による石灰化抑制」と、「Piezo1を起点とする痛覚関連Ca2+応答の増幅経路」は、関連する研究系ではありますが、同じ一つの実験で全てが証明されたわけではありません。
そしてNieら2026年は、胎生末期から出生時の象牙芽細胞終末分化を見ています。
一方、Matsunagaらの研究は、より成熟した象牙芽細胞系の石灰化を見ています。
「成熟すること」と、「成熟した細胞がどれだけ石灰化基質を形成するか」は同じ現象ではありません。
細胞の発生段階が変われば、同じPiezo1でも役割が変化しても不思議ではありません。
流体せん断応力では、Piezoを落とすとDSPPやDMP1が増えた
Xuらの2024年研究では、MDPC-23 odontoblast lineage cellへ流体せん断応力を加えています。
Piezo1/Piezo2の発現は刺激初期に高く、その後低下しました。
さらにPiezo1またはPiezo2をshRNAでsilencingした状態で流体せん断応力を加えると、DSPP、DMP1、BMP2がscrambled controlより増加しました。
しかしPiezo1/Piezo2を両方落とした場合は単純な加算効果にはならず、DMP1はむしろ低下する条件もありました。
この結果からも、Piezo1とPiezo2は全く同じ仕事をしているわけではないことがうかがえます。
これはNieら2026年で、「単独欠損では目立たず、二重欠損で明瞭な表現型が出る」という結果とも興味深く対応します。
Piezo1とPiezo2は一部を補い合いながら、それぞれ異なる下流シグナルへ接続している可能性があります。
DPSCではCa²⁺/calcineurin/YAPという別経路が出てくる
歯髄幹細胞ではさらに別の経路が報告されています。
Wangら2025年はhuman dental pulp stem cellに流体せん断応力や静水圧を加え、Piezo1-mediated mechanotransductionを調べました。
静水圧下では、Piezo1 → Ca2+ → calcineurin → YAP → odontogenic differentiationという経路が示されています。
calcineurinまたはYAPを阻害すると、静水圧によるodontogenic differentiation促進が抑えられました。
ここではWnt10aでもSEMA3Aでもありません。YAPです。
Piezo1の下流は一つではありません。
Dental papilla cellではFAM83Gという別ルートも報告された
2025年のBiomoleculesでは、rat dental papilla cellを用いた研究が報告されています。
Piezo1はodontogenic differentiationに伴って増加し、Piezo1 knockdownではDSPP、DMP1、ALP、mineralized noduleが低下しました。逆にYoda1ではこれらが増加しました。
さらにRNA-seqからFAM83Gが候補として抽出され、Piezo1 knockdownでFAM83G増加、Yoda1でFAM83G低下、FAM83G knockdownでodontogenic markerと石灰化が増加しました。
この研究では、Piezo1活性化 → FAM83G抑制 → odontogenic differentiation促進というモデルが提案されています。
ただし、この論文の「in vivo」は天然の歯胚内でPiezo1を操作した実験ではありません。
DPCをMatrigelとともにヌードマウス皮下へ移植した異所性odontogenesis modelです。したがって、天然歯で同じことが起こるとそのまま外挿することはできません。
なぜ研究によって結果が逆になるのか
ここまで並べると、「結局、Piezo1は象牙質形成を促進するのか、抑制するのか」と聞きたくなります。
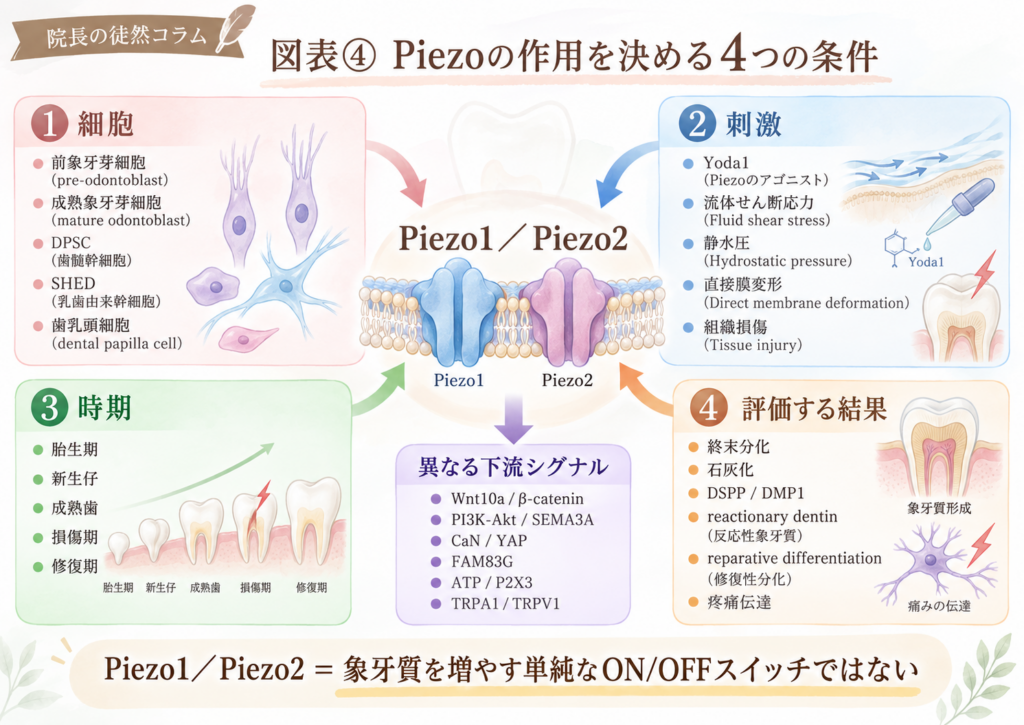
現時点では、作用方向は研究条件に依存すると考えるのが最も妥当です。
各研究では、前象牙芽細胞、成熟象牙芽細胞、human odontoblast-like cell、DPSC、SHED、dental papilla cellなど、対象となる細胞が違います。
刺激も、Yoda1、流体せん断応力、静水圧、直接膜変形、組織損傷など異なります。
胎生期、出生直後、成熟歯、損傷直後、修復期という時間軸も違います。
さらに、終末分化、遺伝子発現、基質沈着、mineralized nodule、反応象牙質量、修復象牙質形成、Ca2+応答、疼痛伝達と、評価しているアウトカムも違います。
これだけ条件が違えば、Piezo1が常に同じ方向へ作用すると考える方が不自然です。
2025年のmineralized tissueにおけるPiezoを整理したレビューでも、象牙質形成に対するPiezo1の作用は文献間で一致しておらず、context-dependentである可能性が整理されています。
反応象牙質と修復象牙質も分けて考えたい
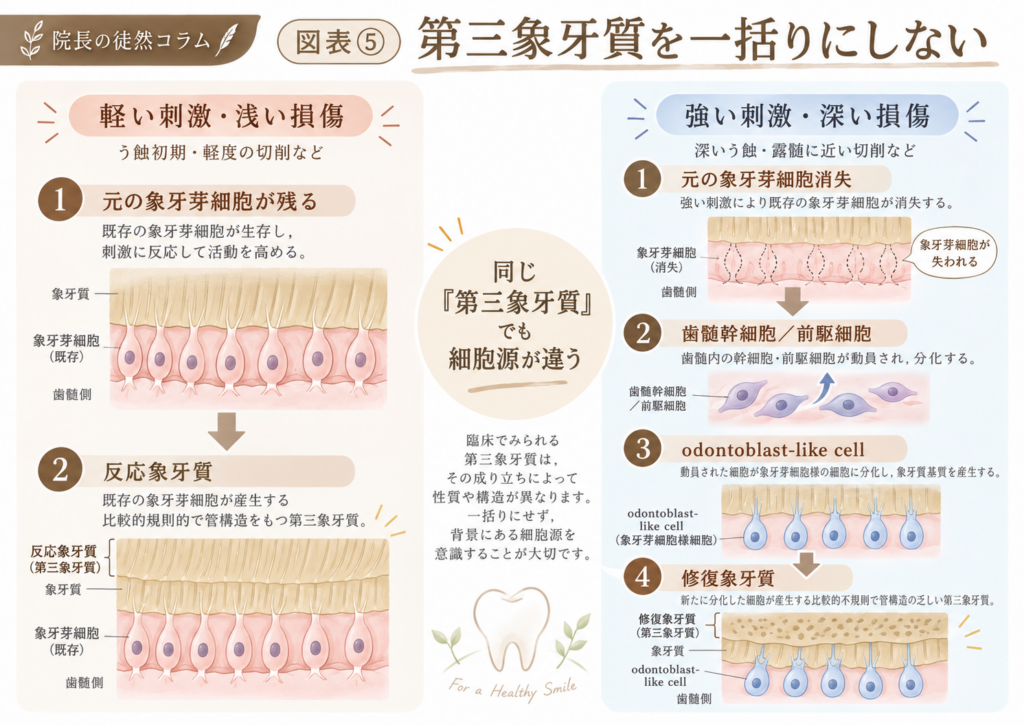
第三象牙質という言葉で一括りにすると、ここも混乱しやすいところです。
Huangら2024年が主として観察したのは反応象牙質(reactionary dentin)です。
軽度損傷後も元の象牙芽細胞の多くが生存し、その生き残った象牙芽細胞が新たに形成する象牙質です。
一方、強い損傷によって元の象牙芽細胞が失われると、歯髄内のstem/progenitor cellから新しいodontoblast-like cellが分化し、修復象牙質(reparative dentin)を形成します。
両者は細胞源が違います。
深在性う蝕に対する象牙質保存や生活歯髄療法については、以前の深在性う蝕でどこまで削るかを考えた記事でも扱いました。
今回のmechanobiologyまで考えると、「第三象牙質ができる」という一言だけでは足りません。
誰が作っている第三象牙質なのか。
そこまで区別して考える必要があります。
元の象牙芽細胞が失われたあと、誰が次の象牙芽細胞になるのか
歯髄再生でもPiezo1が登場します。
東京歯科大学の研究では、象牙芽細胞を遺伝的に枯渇させたマウスで、細胞稠密層のNG2陽性細胞がNestin、DSPP、Piezo1を発現しました。
歯髄血管周囲に存在するpericyteの一部が、新しいodontoblast-like cellの供給源になり得るという研究です。
さらに2025年の研究プロジェクト報告では、歯髄血管周囲のmicroenvironment、すなわちnicheがstem/progenitor cellの維持・活性化に関与し、pericyteから象牙芽細胞様細胞へ向かう過程でER stress responseも関係する可能性が整理されています。
ただし、Nieら2026年の発生期odontoblastと、損傷後に生じるreplacement odontoblast-like cellは同じ実験系ではありません。
一本の連続したPiezo経路として証明されたわけではありません。
それでも、発生と修復という異なる状況の双方で、「象牙芽細胞になる過程」の近くにPiezoが現れることは興味深いところです。
歯髄再生では「薬」だけでなく「力学環境」を設計する時代になるのか
再生歯内療法というと、stem cell、growth factor、scaffoldなど、生化学的・細胞生物学的要素を中心に考えがちです。
しかしmechanobiologyから見ると、scaffold stiffness、viscoelasticity、hydrostatic pressure、fluid flow、cell tensionそのものが細胞運命を変える可能性があります。
Piezo1は、その「物理環境」を細胞内シグナルへ翻訳する入口候補の一つです。
DPSCではPiezo1-CaN-YAP、dental papilla cellではPiezo1-FAM83G、SHEDではPiezo1とWNT signaling・ciliogenesisとの関係が研究されています。
なおSHEDにおけるPiezo1とWNT signaling・ciliogenesisを扱った代表的研究はMiyazakiらの2019年の報告です。
歯髄再生は「何のgrowth factorを入れるか」だけではなく、「どんな硬さの環境に置くか」「どのような圧や流れを受けるか」「細胞が何を感じる足場を作るか」まで設計対象になるのかもしれません。
一方、現在の臨床で行っているMTAを用いて生活歯髄を保存し、硬組織形成を期待する治療と、Piezoを標的とした未来の再生医療は同じ段階の話ではありません。
Piezo agonistを歯髄へ投与すれば象牙質や歯髄を再生できる、という臨床エビデンスは現在ありません。
さらに基本的な問題――ヒト成熟象牙芽細胞にPiezo1/Piezo2は本当にあるのか
マウスの基礎研究からヒト臨床へ進む前に、さらに基本的な問題があります。
ヒトの成熟象牙芽細胞にPiezo1/Piezo2はどこまで発現しているのか。
研究間で結果が完全には一致していません。
Huangらは健康なヒト第三大臼歯の象牙芽細胞で強いPIEZO1発現を報告しています。Sunらもヒト歯髄組織やodontoblast-like cellでPIEZO1を確認しています。
ところがGaiteらは、成人ヒト永久歯の歯髄辺縁部にPIEZO1/PIEZO2陽性細胞を多数認めたものの、それらは典型的な成熟象牙芽細胞形態を示さず、vimentin陰性でした。
著者らはpre-odontoblastまたはdental pulp stem cell様細胞ではないかと解釈しています。
一方、マウスではPIEZO1/PIEZO2が成熟象牙芽細胞に広く共局在しました。
種差なのか。抗体や脱灰処理など方法論の差なのか。細胞の成熟段階の違いなのか。まだ完全には決着していません。
したがって、「マウス象牙芽細胞でPiezo1/Piezo2が重要だった。したがってヒトでも同じである」と一足飛びに書くことはできません。
Wntも「上げれば上げるほど良い」わけではない
今回のNieらの原著自身が、さらに重要な点を示しています。
前象牙芽細胞がterminal differentiationへ向かう時期には、Wnt signalingが強く必要と考えられます。
一方、よく分化した象牙芽細胞ではDkk1、Sclerostin、Axin2などのWnt抑制・negative feedback系が働きます。
また、分泌型の成熟象牙芽細胞ではactive β-cateninが、まだ分化途中の象牙芽細胞より低くなっていました。
つまり、Wnt signalingは高ければ高いほどよいわけではありません。
前象牙芽細胞を終末分化させる局面では強く必要でも、成熟した後には適切なレベルへ調節する必要があります。
このfine-tuningという考え方は、Piezo研究を読むうえでも重要でしょう。
発生中だから促進方向に働く。損傷時だから必要になる。一方、成熟象牙芽細胞で過剰に活性化すると、石灰化が抑制される条件もある。
そう考えれば、一見逆に見える複数の研究結果が、必ずしも互いを否定しているわけではありません。
今回のNieらの研究にも限界は多い
今回の論文は非常に興味深い研究ですが、臨床応用へ急ぐべきではありません。
- マウスの発生研究である。
- Wnt1-Cre2を用いているため、象牙芽細胞だけを標的にしたPiezo1/Piezo2 dKOではない。
- Piezo1/Piezo2 dKOマウスはP1を越えて生存できず、萌出後、本格的な咀嚼開始後、二次象牙質形成、成体での長期的な損傷応答を同じモデルで追跡できない。
- 出生後に死亡した個体では、全身状態の悪化が歯の発生へ追加の影響を与えた可能性がある。
- 歯胚へ一定量のmechanical forceを加えてPiezoを開いた研究ではない。
- Yoda1のoff-target effectを完全には除外できない。
- PiezoからWntへ至る直接的な分子経路は未解明である。
- Yoda1実験では象牙芽細胞層高そのものには有意差がない。
- Yoda1を母体へ投与した実験で、仔を解析単位とした際のlitter effectが統計的にどこまで処理されているかは本文から明確ではない。
- ヒト成熟象牙芽細胞におけるPiezo1/Piezo2の局在にも研究間の不一致がある。
これだけの留保があります。
それでも、この研究は何を変えたのか
それでも今回の研究の価値は明確です。
これまで歯科領域のPiezo研究は、「力を感じる」「痛みを感じる」「骨が力へ適応する」という文脈で語られることが多くありました。
今回そこへ、象牙芽細胞そのものが成熟する過程が加わりました。
Piezo1とPiezo2を同時に失うと、象牙芽細胞終末分化が遅れる。
Wnt10a/β-catenin signalingが低下する。
Wnt10aを補うと表現型が改善する。
Piezo1をYoda1で刺激すると、形態的成熟、Col1a1、Wnt10a、active β-cateninが促進方向へ動く。
遺伝子欠損、rescue、薬理学的介入という異なる方向から得られた結果が、同じ生物学的モデルを支持しています。
これは単なる発現研究より一段強い証拠です。
象牙質を「削る対象」としてだけ見ていたのかもしれない
臨床で象牙質を見るとき、われわれ歯科医師はどうしても、「どこまで削るか」「接着できるか」「軟化しているか」「露髄しないか」「第三象牙質が形成されるか」という治療操作の対象として見ます。
しかし、そのすぐ内側に並ぶ象牙芽細胞は、単純な「象牙質製造細胞」ではないようです。
物理刺激を読み、Ca2+を動かし、ATPを放出し、神経と情報を交換し、損傷時には反応象牙質形成を変え、新しいodontoblast-like cellが生まれる再生過程にもmechanotransductionが関係する。
そして今回の研究では、その象牙芽細胞自身が成熟する段階にまでPiezo1/Piezo2とWnt signalingが関わっている可能性が示されました。
こうして見ると、知覚過敏、咬合、象牙質形成、第三象牙質、生活歯髄療法、歯髄再生と、これまで別々の章として習ってきた話が、「細胞が力をどう読むか」というmechanotransductionを通して少しずつつながって見えてきます。
歯は「力」を感じて象牙質を作るのか
最初の問いに戻ります。
歯は「力」を感じて象牙質を作るのか。
現時点で、「はい。よく噛めば象牙質が増えます」という答えにはなりません。
それは行き過ぎです。
今回のNieらの研究が示したのは、もっと基礎的で、むしろその方が面白い事実です。
象牙芽細胞が象牙質を作る成熟細胞へ変わる過程そのものに、Piezo1/Piezo2というmechanosensorを介した情報処理が組み込まれている可能性がある。
そして、その過程にはcanonical Wnt signalingが機能的に関わっている。
一方、成熟後の象牙芽細胞ではPiezo1は感覚伝達にも関わり、損傷時には反応象牙質形成にも関わります。
DPSCやdental papilla cellではさらに別の下流シグナルが働き、条件によってはPiezo1活性化が石灰化を抑制する結果さえあります。
だからPiezo1/Piezo2は、「象牙質を増やすスイッチ」ではありません。
むしろ、歯の細胞が自分の置かれた物理環境を読み、その時々の細胞状態に応じて異なる生物学的応答へ変換するための入力装置の一つと考える方が、現在までの研究結果には合っています。
硬く、動かず、完成した構造物に見える歯の内側で、細胞は周囲の「力」を読み続けている。
その読み取りが、発生にも、痛みにも、修復にも、そして将来の再生医療にもつながるとすれば、歯はわれわれが思っていた以上に力学的な臓器なのかもしれません。
参考文献
- Nie X, Huang K, Chu E, Chung MK. Piezo channels contribute to the terminal cytodifferentiation of odontoblasts via modulation of canonical Wnt signaling. International Journal of Oral Science. 2026;18:61.
- Huang P, Jiang RX, Wang F, Qiao WW, Ji YT, Meng LY, Bian Z. PIEZO1 Promotes Odontoblast-Mediated Reactionary Dentinogenesis via SEMA3A. Journal of Dental Research. 2024;103(9):889-898.
- Sun XF, Qiao WW, Meng LY, Bian Z. PIEZO1 Ion Channels Mediate Mechanotransduction in Odontoblasts. Journal of Endodontics. 2022;48:749-758.
- Ohyama S, Ouchi T, Kimura M, et al. Piezo1-pannexin-1-P2X3 axis in odontoblasts and neurons mediates sensory transduction in dentinal sensitivity. Frontiers in Physiology. 2022;13:891759.
- Xu X, Guo Y, Liu P, et al. Piezo Mediates the Mechanosensation and Injury-Repair of Pulpo-Dentinal Complex. International Dental Journal. 2024;74:71-80.
- Wang X, Dong S, Dong Q, Sun X. Piezo1 Promotes Odontogenic Differentiation of Dental Pulp Stem Cells Under Stress Conditions. International Dental Journal. 2025;75:1885-1896.
- Sheng X, Li J, Ma H, et al. Piezo1 Regulates Odontogenesis via a FAM83G-Mediated Mechanism in Dental Papilla Cells In Vitro and In Vivo. Biomolecules. 2025;15:316.
- Cho YS, Han HM, Jeong SY, et al. Expression of Piezo1 in the Trigeminal Neurons and in the Axons That Innervate the Dental Pulp. Frontiers in Cellular Neuroscience. 2022;16:945948.
- Gaite JJ, Solé-Magdalena A, García-Mesa Y, et al. Immunolocalization of the mechanogated ion channels PIEZO1 and PIEZO2 in human and mouse dental pulp and periodontal ligament. The Anatomical Record. 2024;307:1960-1968.
- Fu X, Kim HS. Dentin Mechanobiology: Bridging the Gap between Architecture and Function. International Journal of Molecular Sciences. 2024;25:5642.
- Nottmeier C, Lavicky J, Gonzalez Lopez M, et al. Mechanical-induced bone remodeling does not depend on Piezo1 in dentoalveolar hard tissue. Scientific Reports. 2023;13:9563.
- Du Y, Zheng J, Xu B, Peng C, Yang K. Piezo1 participates in the tension-driven osteogenic differentiation of periodontal ligament stem cells. BMC Oral Health. 2025;25:1155.
- Wang Y, Liu G, Tao Z, et al. PIEZO1-Mediated Mechanotransduction in Craniofacial Biology. FASEB Journal. 2025;39:e70937.
- Yamashiro T, et al. Wnt10a regulates dentin sialophosphoprotein mRNA expression and possibly links odontoblast differentiation and tooth morphogenesis. Differentiation. 2007;75:452-462.
- Matsunaga M, Kimura M, Ouchi T, et al. Mechanical Stimulation-Induced Calcium Signaling by Piezo1 Channel Activation in Human Odontoblast Reduces Dentin Mineralization. Frontiers in Physiology. 2021;12:704518.
- Miyazaki A, Sugimoto A, Yoshizaki K, et al. Coordination of WNT signaling and ciliogenesis during odontogenesis by piezo type mechanosensitive ion channel component 1. Scientific Reports. 2019;9:14762.
- 田中亜生. TRPチャネルを介した象牙芽細胞の感覚受容機能獲得に関する発生学的研究. 歯科学報. 2025;125(2):139-144.
- 倉島竜哉. 細胞内アラキドン酸カスケードを介したPiezo1-TRPA1/TRPV1チャネル連関が象牙芽細胞機能を調節する. 歯科学報. 2025;125(3):196-198.
- 黄地健仁, 倉島竜哉, 木村麻記, 澁川義幸. 歯髄血管周囲のニッチ機構とペリサイトが担う象牙質再生―歯髄における小胞体ストレス制御機構:恒常性維持と再生応答の鍵―. 歯科学報. 2025;125(3):221-228.
- Lee PR, Lee K, Park JM, Kim S, Oh SB. Functional and distinct roles of Piezo2-mediated mechanotransduction in dental primary afferent neurons. International Journal of Oral Science. 2025;17:45.
- Dong J, Li R, Chen Y, Zhu G, Liang X. Mechanosensitive Piezo channels in mineralized tissues: emerging roles in osteodental adaptation and disease. Frontiers in Cell and Developmental Biology. 2025;13:1607337.
- Coste B, Mathur J, Schmidt M, et al. Piezo1 and Piezo2 are essential components of distinct mechanically activated cation channels. Science. 2010;330:55-60.